


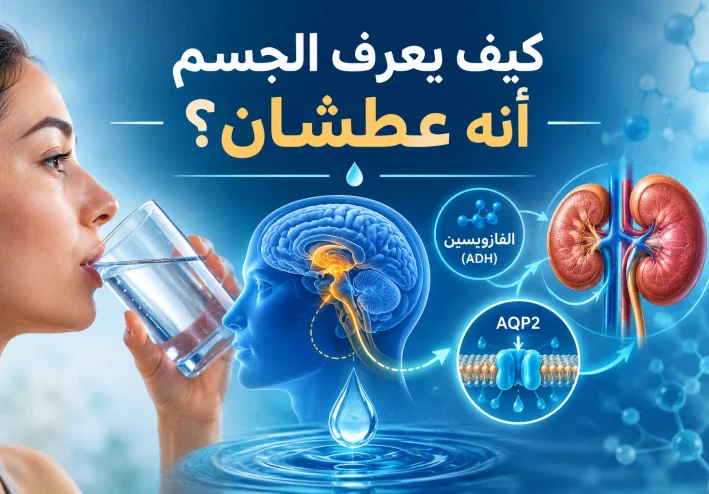
كيف يعرف الجسم أنه عطشان؟
كيف يعرف الجسم أنه عطشان؟
حين يتحول تغير مجهري في كيمياء الدم إلى إحساس يدفعنا للبحث عن الماء
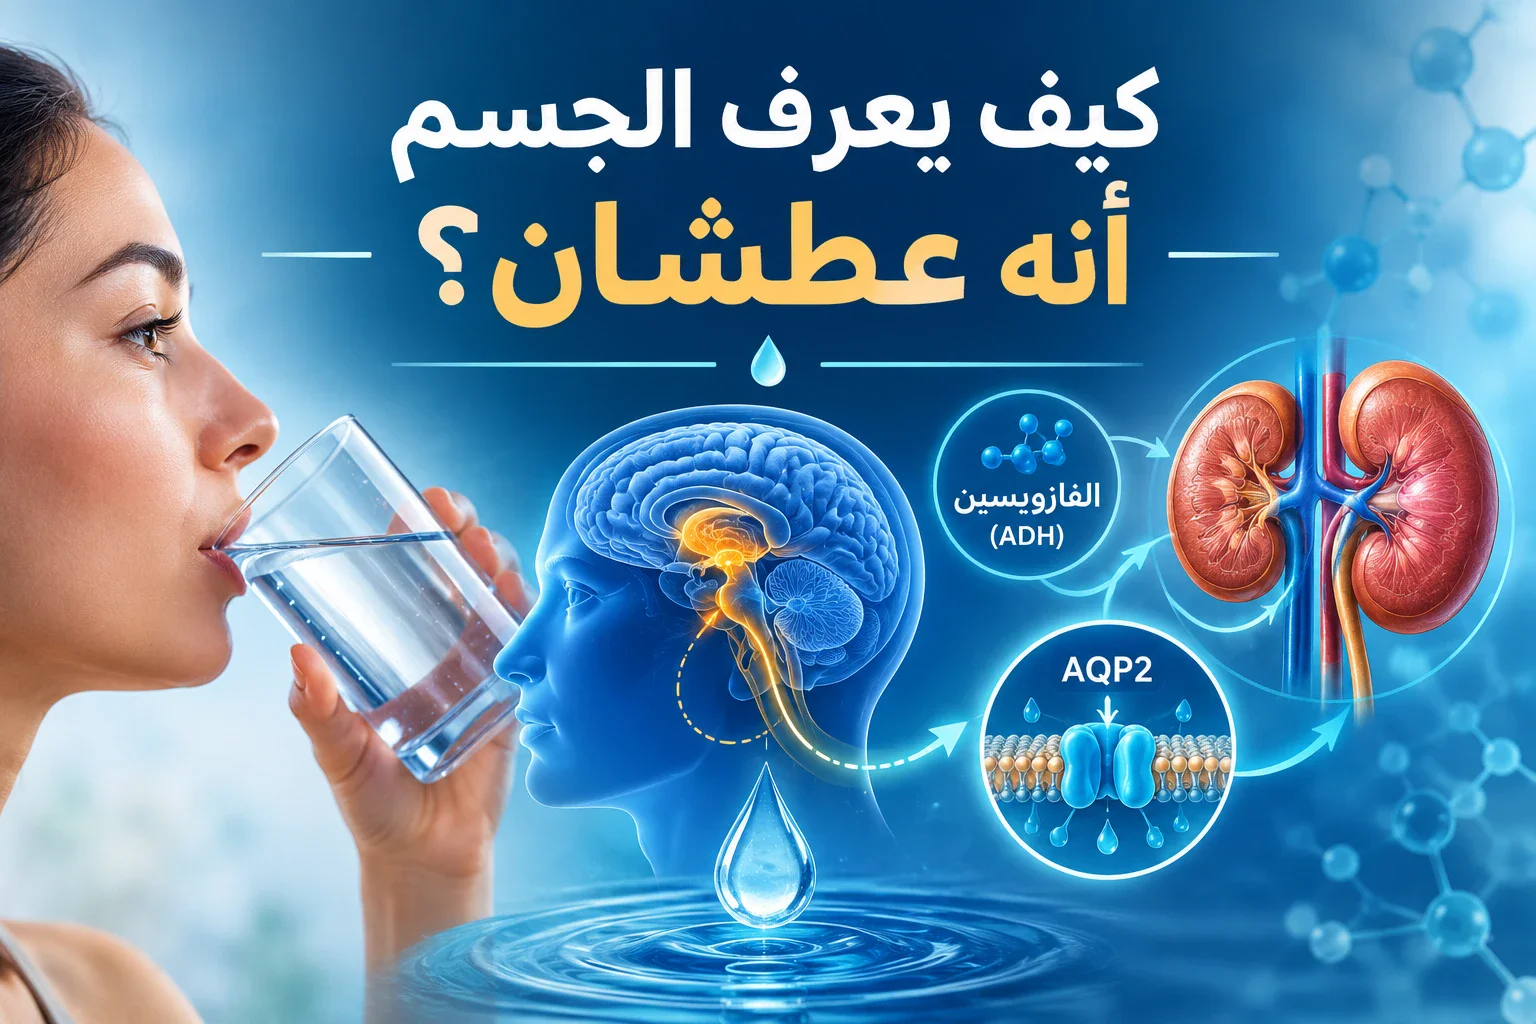
مقدمة: العطش الذي يبدأ قبل أن نعرف أننا بحاجة إلى الماء
نحن لا نعيش داخل الماء، لكن أجسادنا تفعل شيئًا قريبًا من ذلك.
فالإنسان يحمل داخله بيئة مائية معقدة تتوزع بين الدم والسائل خارج الخلايا والسائل داخلها، وتتحرك فيها الأملاح والبروتينات والمواد الغذائية والهرمونات باستمرار. وتحتاج الخلايا إلى أن تبقى هذه البيئة ضمن حدود ضيقة نسبيًا؛ لأن تغيرًا كبيرًا في تركيز الماء أو الصوديوم يمكن أن يؤثر في حجم الخلايا، ووظائف البروتينات، ونشاط الجهاز العصبي، والدورة الدموية.
لهذا السبب لا يمثل الماء بالنسبة للجسم مجرد "شراب".
إنه جزء من نظام الاتزان الداخلي أو الاستتباب (Homeostasis)، أي قدرة الكائن الحي على المحافظة على بيئة داخلية مستقرة نسبيًا رغم تغير الظروف الخارجية.
ومن هنا يصبح السؤال أكثر تعقيدًا مما يبدو:
كيف يعرف الجسم أن الماء ينقص؟
الإجابة ليست أن الدماغ "يشعر" بالجفاف بطريقة مباشرة، ولا أن الفم الجاف وحده يخبرنا بأن الوقت حان للشرب. بل توجد منظومة متكاملة تقيس تركيز السوائل، وتركيز الصوديوم، وحجم الدم، وضغط الدورة الدموية، وإشارات هرمونية وعصبية، ثم تحول هذه المعلومات إلى دافع سلوكي اسمه العطش.
والأكثر إثارة أن العلماء لم يعودوا ينظرون إلى العطش باعتباره مجرد استجابة متأخرة لنقص الماء.
فبعض دوائر العطش تستطيع أن تعمل بطريقة تنبؤية؛ أي أنها تستعد قبل حدوث العجز المائي الكامل، كما يمكن لإشارات تأتي من الفم والجهاز الهضمي أثناء الشرب أن تخفف الشعور بالعطش قبل أن يصل الماء الذي شربناه بالكامل إلى الدورة الدموية.
إذن، عندما تقول:
"أنا عطشان."
فأنت لا تصف إحساسًا بسيطًا في الفم.
أنت تصف النتيجة النهائية لعملية بيولوجية تجمع بين الكيمياء العصبية، والغدد الصماء، ووظائف الكلى، والإحساس الداخلي بالجسم، والذاكرة والتوقع والسلوك.
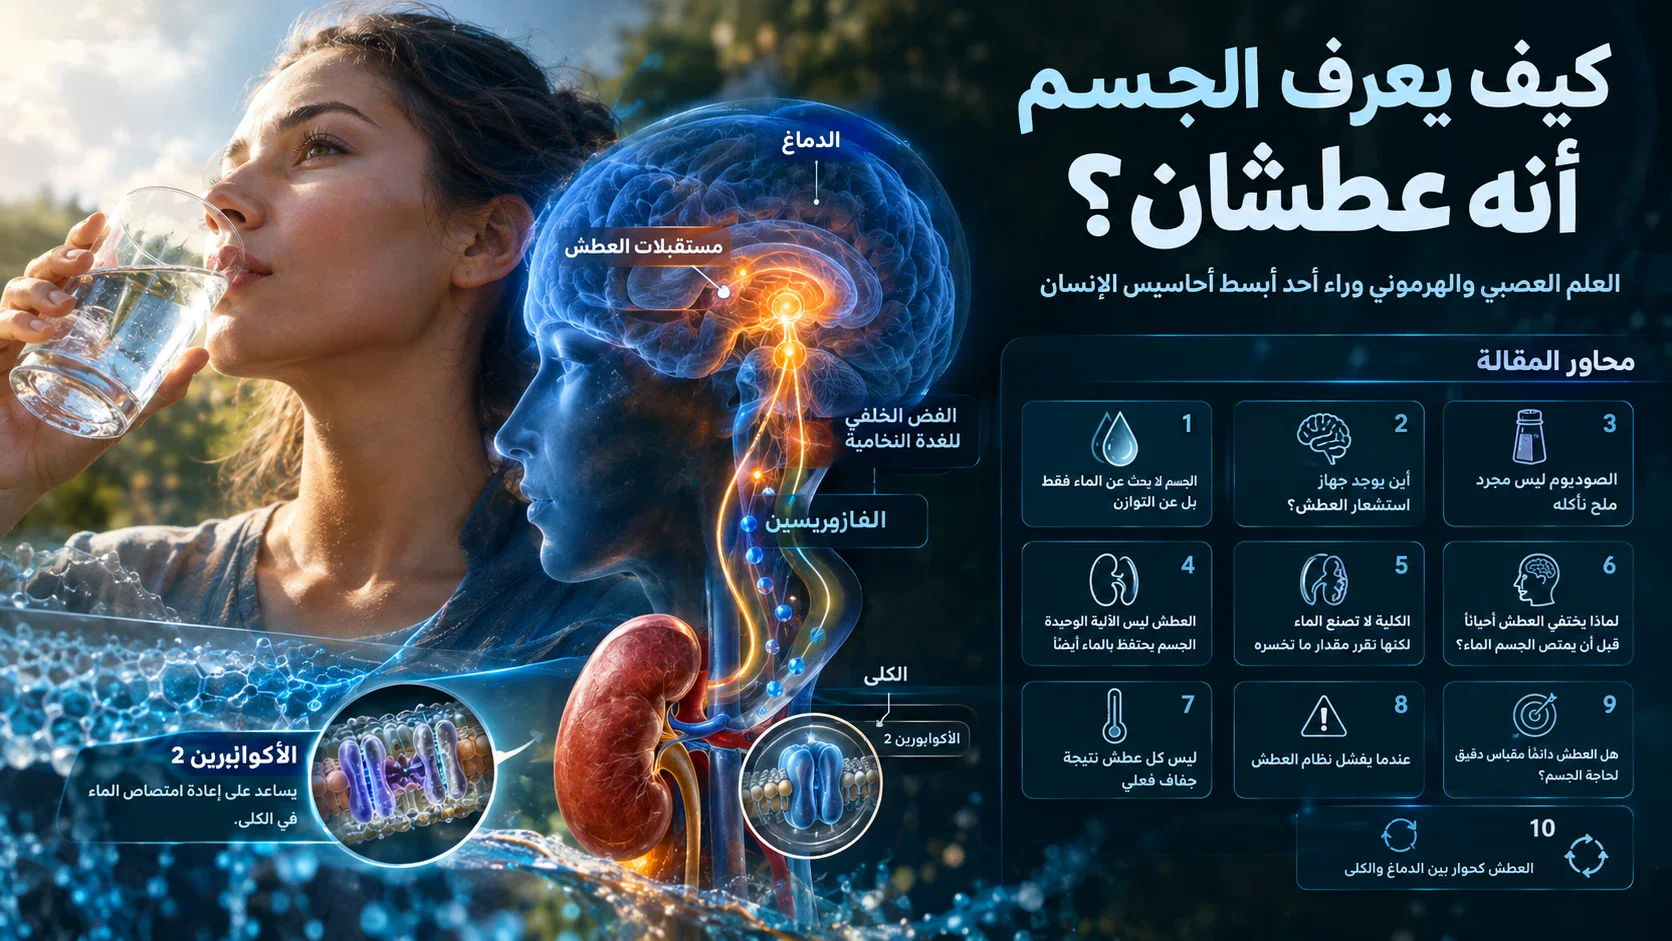
المحور الأول: الجسم لا يبحث عن الماء فقط، بل عن التوازن
لماذا لا تكفي معرفة كمية الماء الموجودة؟
قد يبدو منطقيًا أن الجسم يستطيع حساب كمية الماء الموجودة بداخله ثم إطلاق إنذار عندما تنخفض.
لكن علم وظائف الأعضاء أكثر دقة من ذلك.
فالمشكلة ليست في كمية الماء المطلقة وحدها، وإنما في العلاقة بين الماء والمواد الذائبة فيه.
وهنا يظهر مفهوم أساسي يسمى الأسمولالية (Osmolality).
بصورة مبسطة، تعبر الأسمولالية عن تركيز الجزيئات الذائبة في كمية معينة من الماء. ويُعد الصوديوم ومشتقاته من أهم محددات الأسمولالية في السائل خارج الخلايا.
إذا فقد الجسم ماءً دون أن يفقد كمية مماثلة من المواد الذائبة، يصبح السائل خارج الخلايا أكثر تركيزًا.
وهذا التغير ليس تفصيلًا كيميائيًا هامشيًا.
إنه معلومة فسيولوجية.
عندما ترتفع أسمولالية البلازما، تتحرك المياه وفق الفروق الأسموزية، ويمكن أن تفقد الخلايا جزءًا من مياهها. وتكون بعض الخلايا العصبية المتخصصة شديدة الحساسية لهذه التغيرات، فتغير نشاطها الكهربائي وتطلق إشارات تؤثر في سلوك الشرب وإفراز الفازوبريسين.
ومن هنا يمكن فهم العطش باعتباره جزءًا من نظام استشعار كيميائي للبيئة الداخلية.
الجسم لا يسأل فقط:
كم لترًا فقدت؟
بل يسأل سؤالًا أكثر أهمية:
ماذا حدث لتركيز السوائل التي تعيش فيها خلاياي؟
وهذا الفرق هو أحد المفاتيح الأساسية لفهم فسيولوجيا العطش.
المحور الثاني: أين يوجد جهاز استشعار العطش؟
عندما يصبح الدم معلومة عصبية
لا توجد "لمبة عطش" واحدة في الدماغ.
بل توجد شبكة عصبية متخصصة، ومن أهم مكوناتها منطقتان تقعان في الجزء الأمامي من الدماغ:
العضو تحت القبو (Subfornical Organ – SFO)
والعضو الوعائي للصفيحة الانتهائية (OVLT).
وتتميز هذه المناطق بخصائص تشريحية تجعلها قادرة على استشعار مكونات الدم بصورة مباشرة نسبيًا؛ إذ تقع ضمن مناطق تختلف عن معظم أنسجة الدماغ في نفاذية الحاجز الدموي الدماغي.
وهذا أمر بالغ الأهمية.
فالدماغ محمي عادةً بحاجز دموي دماغي يحد من وصول كثير من المواد الموجودة في الدم إلى النسيج العصبي.
لكن الجسم يحتاج في هذه الحالة إلى مناطق تستطيع "قراءة" البيئة الكيميائية للدورة الدموية.
وهنا تعمل هذه البنى كأنها محطات مراقبة داخلية.
تستجيب الخلايا في SFO وOVLT للتغيرات في الصوديوم والأسمولالية، وتشارك قنوات ومكونات خلوية مختلفة في عملية الاستشعار، بما في ذلك آليات مرتبطة بإشارات الصوديوم وقنوات حساسة للتغيرات الأسموزية.
لكن الاستشعار ليس نهاية القصة.
تنتقل المعلومات إلى شبكات أخرى، من بينها النواة أمام البصرية المتوسطة (MnPO)، ثم إلى دوائر عصبية مرتبطة بالوطاء والقشرة الدماغية.
وبذلك يتحول تغير فيزيائي-كيميائي صغير إلى سلسلة من العمليات:
تغير الأسمولالية → استشعار عصبي → معالجة مركزية → دافع للشرب → سلوك بحث عن الماء.
ومن المهم هنا ألا نتخيل العطش كمنعكس عصبي بسيط.
الأبحاث الحديثة تشير إلى شبكة أكثر تعقيدًا تتفاعل فيها مناطق تحت قشرية مع مناطق قشرية مرتبطة بالإحساس الداخلي والدافعية، من بينها القشرة الجزيرية والقشرة الحزامية الأمامية.
أي أن "العطش" ليس مجرد معلومة عن الجسم.
إنه معلومة تتحول إلى رغبة ثم إلى سلوك.
المحور الثالث: الصوديوم ليس مجرد ملح نأكله
لماذا قد يزيد الطعام المالح رغبتنا في الماء؟
عندما نتحدث عن العطش، يميل التفكير اليومي إلى اختزال المسألة في "نقص الماء".
لكن الصوديوم يغير المعادلة.
فالصوديوم هو أحد أهم المكونات الأسموزية في السائل خارج الخلايا، ولذلك يمكن لارتفاع تركيزه أن يرفع أسمولالية البلازما ويحفز آليات العطش.
وهذا يفسر ظاهرة مألوفة:
تناول وجبة مالحة، ثم الشعور بالحاجة إلى الماء.
لكن المسألة أعمق من فكرة أن "الملح يسحب الماء".
إنها نتيجة تفاعل بين:
- تركيز الصوديوم.
- توزيع الماء بين الحجرات المختلفة في الجسم.
- الأسمولالية.
- نشاط دوائر العطش.
- الهرمونات المنظمة للماء.
- وظائف الكلى.
ولهذا لا يمكن النظر إلى الماء والصوديوم كمتغيرين منفصلين.
الجسم يحاول باستمرار المحافظة على تونسيّة السوائل وحجمها ضمن نطاقات مناسبة، ويستخدم سلوك الشرب والاحتفاظ بالماء والتعامل الكلوي مع الصوديوم والماء لتحقيق ذلك.
وهنا تظهر إحدى روائع الاستتباب:
الجسم لا يحاول الوصول إلى "أكبر كمية من الماء"، بل إلى التوازن المناسب بين الماء والمواد الذائبة وحجم السائل خارج الخلايا.
المحور الرابع: العطش ليس الآلية الوحيدة — الجسم يحتفظ بالماء أيضًا
ماذا يحدث إذا لم نشرب؟
افترض أن الإنسان فقد الماء ولم يستجب للعطش فورًا.
هل ينتظر الجسم ببساطة حتى يعود الإنسان إلى صنبور الماء؟
لا.
يعمل نظام آخر بالتوازي مع العطش، وهو النظام الهرموني الذي يعتمد بصورة أساسية على الفازوبريسين (Vasopressin)، المعروف أيضًا باسم الهرمون المضاد لإدرار البول (ADH).
عندما ترتفع أسمولالية البلازما أو يحدث انخفاض مهم في حجم الدم، يمكن أن يزداد إفراز الفازوبريسين من الفص الخلفي للغدة النخامية.
ثم ينتقل الهرمون عبر الدم إلى الكلى.
وهنا تبدأ قصة جزيئية مذهلة.
في القنوات الجامعة في الكلية توجد خلايا تسمى الخلايا الرئيسية (Principal Cells).
وتحت تأثير الفازوبريسين، ينشط مستقبل يسمى V2 receptor، فتبدأ سلسلة إشارات داخل الخلية تؤدي إلى زيادة وجود قناة مائية مهمة على السطح المواجه للبول، وهي:
Aquaporin-2 — AQP2
والأكوابورين 2 ليس مجرد "ثقب للماء".
إنه قناة بروتينية متخصصة تسمح بمرور الماء عبر غشاء الخلية، ويسهم تنظيمها في تحديد مقدار الماء الذي تستطيع الكلية إعادة امتصاصه.
فعندما يصل الفازوبريسين، تتحرك حويصلات تحتوي على AQP2 نحو الغشاء القِمّي للخلية، فتزداد نفاذية القناة الجامعة للماء.
وعندما تقل الحاجة إلى الاحتفاظ بالماء، يمكن أن يتراجع تأثير الفازوبريسين وتُسحب القنوات من الغشاء.
إذن لدينا منظومتان تعملان معًا:
الدماغ:
"ابحث عن الماء واشرب."
الكلى:
"إلى أن يحدث ذلك، احتفظ بما لديك."
وهذه ليست استعارة أدبية فحسب؛ إنها ترجمة مبسطة لنظام فسيولوجي متكامل تشارك فيه الإشارات العصبية والهرمونية والكلوية.
المحور الخامس: الكلية لا تصنع الماء، لكنها تقرر مقدار ما تخسره
الأكوابورين 2: بوابة مائية تتحكم فيها الهرمونات
تصف بعض الشروحات الشعبية الكلى وكأنها "مرشح" يخرج منه البول.
لكن هذه الصورة ناقصة جدًا.
الكلى جهاز ديناميكي يعيد امتصاص كميات هائلة من الماء والمواد الذائبة، ثم يعدّل تركيب البول النهائي وفق احتياجات الجسم.
وتلعب القنوات الجامعة دورًا مهمًا في تحديد مقدار الماء الذي سيبقى في الجسم.
في الظروف التي يرتفع فيها الفازوبريسين، تنشط إشارات خلوية تشمل مسار cAMP/PKA، وتساعد على نقل AQP2 إلى الغشاء القِمّي للخلايا الرئيسية. كما يمكن للفازوبريسين، على المدى الأطول، أن يؤثر في كمية بروتين AQP2 نفسها.
وهنا يظهر أحد الفروق المهمة بين الاستجابة السريعة والاستجابة طويلة الأمد.
هناك تنظيم يمكن أن يحدث خلال دقائق عبر إعادة توزيع القنوات الموجودة بالفعل.
وهناك تنظيم أبطأ يمكن أن يغير كمية البروتين الموجودة في الخلية.
هذه التفاصيل الجزيئية تكشف أن الحفاظ على الماء ليس قرارًا واحدًا، بل نظام متعدد الأزمنة:
- استجابة عصبية سريعة.
- إفراز هرموني.
- تعديل في نفاذية الكلية.
- تغيرات خلوية وجزيئية أطول أمدًا.
وبهذا تصبح الكلية شريكًا أساسيًا للدماغ في اتخاذ القرار المائي للجسم.
العطش وحده لا يحافظ على الماء.
والكلى وحدها لا تعرف دائمًا متى يجب أن تحتفظ به.
إنها منظومة واحدة موزعة على أعضاء مختلفة.
المحور السادس: لماذا يختفي العطش أحيانًا قبل أن يمتص الجسم الماء؟
الدماغ لا ينتظر النتيجة؛ أحيانًا يستبقها
هذه من أكثر النقاط إثارة في علم العطش.
إذا كان الشعور بالعطش ناتجًا عن ارتفاع أسمولالية الدم، فمن المنطقي أن نتوقع استمرار العطش حتى يصل الماء إلى الدم ويعيد الأسمولالية إلى وضعها السابق.
لكن التجربة اليومية لا تبدو دائمًا هكذا.
نشرب الماء، وبعد وقت قصير نسبيًا نشعر بالارتواء.
وهذا يمكن تفسيره جزئيًا بوجود إشارات استباقية (Anticipatory/Feedforward Signals).
فعند دخول الماء إلى الفم والبلعوم، تنشط مستقبلات وإشارات عصبية يمكنها إرسال معلومات إلى دوائر العطش في الدماغ. كما يمكن لتمدد المعدة وإشارات الجهاز الهضمي أن تشارك في تنظيم الشعور بالامتلاء المائي.
وهذا يعني أن الدماغ لا يعمل وفق نموذج بسيط:
"انتظر حتى تصل المياه إلى الدم ثم قرر."
بل يستطيع استخدام معلومات مبكرة من عملية الشرب نفسها.
وهنا تظهر فكرة مهمة في علم الأعصاب الحديث:
الدماغ لا ينظم الحالة الداخلية فقط بعد حدوث التغير؛ بل يستطيع أحيانًا توقع التغير والاستعداد له.
وهذا هو الفرق بين:
Feedback — التغذية الراجعة
و
Feedforward — التنظيم الاستباقي.
الأول يصحح الخطأ بعد حدوثه.
والثاني يحاول منع الوصول إليه أو تقليل مداه.
ويبدو أن العطش يستخدم الآليتين معًا.
المحور السابع: ليس كل عطش نتيجة جفاف فعلي
الإحساس بالعطش أوسع من مجرد "نقص الماء"
هنا نحتاج إلى قدر من الحذر العلمي.
في الخطاب اليومي، تُستخدم كلمة "عطش" لتفسير كل رغبة في الشرب تقريبًا.
لكن فسيولوجيًا، توجد ظروف يمكن أن تحفز سلوك الشرب أو تغيره دون أن تكون الصورة مجرد فقد بسيط للماء.
فالحرارة وارتفاع درجة حرارة الجسم وتناول الطعام وبعض الإشارات المرتبطة بالإيقاع اليومي يمكن أن تؤثر في أنظمة العطش، وقد وصفت المراجعات الحديثة ما يسمى العطش الاستباقي الذي قد يظهر قبل حدوث عجز مائي واضح.
كما أن انخفاض حجم الدم أو ما يسمى نقص حجم الدم (Hypovolemia) يمثل مسارًا آخر لتحفيز العطش، مختلفًا جزئيًا عن ارتفاع الأسمولالية.
فعندما ينخفض حجم الدورة الدموية، يمكن أن تنشط مستقبلات الضغط والحجم، ويشارك نظام الرينين–أنجيوتنسين في الاستجابة، بما في ذلك الأنجيوتنسين II الذي يمكن أن يحفز الشرب ويسهم في تنظيم الفازوبريسين.
وبذلك يمكن تصور العطش على أنه ناتج عن سؤالين كبيرين:
كيف تبدو كيمياء السوائل؟
و
كم يبلغ حجم السوائل المتاحة للدورة الدموية؟
والإجابة عن هذين السؤالين لا تكون دائمًا متطابقة.
قد يكون الجسم بحاجة إلى تصحيح الأسمولالية، أو إلى حماية حجم الدورة الدموية، أو إلى الاستعداد لتغير متوقع.
ومن هنا تأتي أهمية عدم اختزال العطش في مؤشر واحد.
المحور الثامن: عندما يفشل نظام العطش
ماذا يحدث عندما تختل الشبكة؟
إذا كان العطش نظامًا عصبيًا-هرمونيًا-كلويًا متكاملًا، فإن اضطراب أي جزء منه يمكن أن يؤثر في توازن الماء.
يمكن أن تحدث مشكلات في إنتاج الفازوبريسين أو إفرازه، أو في استجابة الكلى له، أو في تنظيم الأكوابورين، أو في آليات العطش نفسها.
ومن الأمثلة المعروفة اضطرابات السكري الكاذب (Diabetes Insipidus)، حيث يؤدي ضعف إنتاج الفازوبريسين أو ضعف استجابة الكلى له إلى فقدان كميات كبيرة من الماء في البول في بعض الأنماط المرضية، ما قد يترافق مع زيادة العطش.
وفي الاتجاه الآخر، يمكن أن يؤدي اضطراب تنظيم الماء والفازوبريسين إلى احتفاظ زائد بالماء واضطراب أسمولالية الجسم.
وهذا يوضح نقطة مهمة:
العطش الطبيعي ليس مرضًا، لكنه أيضًا ليس جهازًا معصومًا من الخطأ.
وقد تتأثر دقته بالأمراض والأدوية والعمر والحالة العصبية والهرمونية ووظائف الكلى وغيرها من العوامل.
لذلك لا يمكن استخدام وجود العطش أو غيابه وحده كأداة تشخيصية عامة.
وقد يشعر شخص بالعطش لأسباب متعددة، بينما قد تكون لدى شخص آخر اضطرابات في توازن الماء دون أن يكون الإحساس بالعطش متناسبًا تمامًا مع حجم المشكلة.
وهذه إحدى الحدود المهمة لأي محاولة لتحويل الإحساس اليومي إلى "جهاز قياس طبي".
المحور التاسع: هل العطش دائمًا مقياس دقيق لحاجة الجسم؟
هنا تبدأ المنطقة التي يجب أن نحذر فيها من التبسيط
من السهل الوقوع في فكرتين متطرفتين:
الأولى:
"اشرب فقط عندما تشعر بالعطش."
والثانية:
"العطش لا قيمة له؛ يجب أن نشرب وفق كمية ثابتة للجميع."
علم وظائف الأعضاء أكثر تعقيدًا من العبارتين.
العطش أحد مكونات تنظيم توازن الماء، لكنه ليس المؤشر الوحيد على الحالة المائية، ولا يعمل بالطريقة نفسها في جميع الأشخاص والظروف.
فالاستجابة للعطش يمكن أن تتأثر بالعمر، والحالة الصحية، ودرجة الحرارة، والنشاط البدني، وتناول الطعام والملح، والأدوية، ووظائف الكلى والجهاز العصبي، وغيرها من المتغيرات.
كما أن الأشخاص الذين يعانون حالات طبية معينة قد يحتاجون إلى أنظمة مختلفة لإدارة السوائل تحت إشراف طبي؛ لذلك لا يمكن تحويل فسيولوجيا العطش العامة إلى وصفة موحدة للجميع.
ومن الناحية العلمية، هذه نقطة مهمة جدًا:
المعلومة الفسيولوجية العامة لا تساوي توصية طبية شخصية.
فالقول إن الفازوبريسين يزيد احتفاظ الكلية بالماء حقيقة فسيولوجية، لكنه لا يعني أن أي شخص ينبغي أن يتلاعب بمستوى هذا الهرمون أو يتناول مادة تؤثر فيه.
والقول إن الصوديوم يؤثر في العطش حقيقة فسيولوجية، لكنه لا يكفي وحده لتحديد ما يجب أن يتناوله شخص بعينه.
والقول إن الماء ضروري للحياة لا يعني أن "المزيد دائمًا أفضل".
التوازن هو القضية الأساسية.
المحور العاشر: العطش كحوار بين الدماغ والكلى
ربما يكون السؤال الحقيقي: من الذي يقرر؟
لو حاولنا اختزال القصة كلها في صورة واحدة، فلن يكون لدينا "عضو مسؤول عن العطش".
بل سيكون لدينا حوار مستمر:
الدم يرسل معلوماته.
المستقبلات العصبية تلتقطها.
الدماغ يفسرها.
الهرمونات تغير سلوك الأعضاء.
الكلى تعدل فقد الماء.
الفم والجهاز الهضمي يرسلان إشارات أثناء الشرب.
ثم تعود المعلومات إلى الدماغ من جديد.
وهكذا تستمر الحلقة.
الدماغ لا يعمل بمعزل عن الكلية.
والكلية لا تعمل بمعزل عن الدماغ.
والاثنان لا يعملان بمعزل عن الدورة الدموية.
وهذا يقودنا إلى فكرة أعمق في علم الأحياء:
الجسم ليس مجموعة أعضاء منفصلة تؤدي وظائف مستقلة.
إنه شبكة ديناميكية من أنظمة مترابطة تتبادل المعلومات باستمرار.
العطش مثال صغير لكنه شديد الوضوح على هذه الفكرة.
فإحساس يبدو شخصيًا جدًا — "أنا عطشان" — هو في الحقيقة ناتج عن تعاون بين جزيئات وقنوات وأعصاب وهرمونات وأعضاء، بعضها يقع في الدماغ وبعضها في الكلى وبعضها في الجهاز الهضمي والدورة الدموية.
وما يصل إلى وعينا في النهاية ليس سوى السطح الشعوري لشبكة أعمق بكثير.
خاتمة: حين يتحدث الجسم بلغة لا نسمعها
العطش ليس مجرد جفاف في الفم.
وليس مجرد نقص في كمية الماء.
وليس زرًا واحدًا داخل الدماغ.
إنه نظام بيولوجي متكامل يحاول باستمرار أن يحافظ على واحدة من أكثر خصائص الحياة أهمية: استقرار البيئة الداخلية.
عندما تتغير أسمولالية الدم، تستطيع مناطق متخصصة مثل SFO وOVLT التقاط الإشارة. ثم تتفاعل شبكات عصبية أخرى لتكوين الدافع الواعي للشرب. وفي الوقت نفسه، يمكن أن يتحرك الفازوبريسين ليغير طريقة تعامل الكلى مع الماء، عبر منظومة معقدة يكون فيها الأكوابورين 2 عنصرًا محوريًا.
وعندما نشرب، لا ينتظر الدماغ بالضرورة وصول كل قطرة إلى الدورة الدموية كي يقرر أن الخطر انتهى؛ فالإشارات القادمة من الفم والجهاز الهضمي تستطيع أن تقدم له معلومات استباقية تساعد على إيقاف دافع الشرب في الوقت المناسب.
وهكذا يصبح العطش مثالًا مذهلًا على الطريقة التي يعمل بها الجسم:
يراقب، ويقارن، ويتنبأ، ويستجيب، ثم يعيد التقييم.
نحن نشعر بالإحساس في لحظة واحدة.
لكن وراء تلك اللحظة سلسلة من الأحداث تبدأ على مستوى الأيونات والجزيئات وتنتهي في الوعي والسلوك.
وربما تكمن روعة العطش في أن أبسط جملة يمكن أن يقولها الإنسان:
"أريد أن أشرب."
تخفي وراءها واحدة من أكثر شبكات التنظيم البيولوجي دقةً في جسده.
فالجسم لا ينتظر دائمًا حتى نكتشف حاجاته.
في كثير من الأحيان، يكتشفها أولًا، ثم يحولها إلى إحساس يسمح لنا بأن نعرفها.
المصادر الموثوقة
- Gizowski C, Bourque CW. The neural basis of homeostatic and anticipatory thirst. Nature Reviews Nephrology. 2018. — مراجعة مرجعية حول الدوائر العصبية للعطش، والعطش الاستتبابي والاستباقي، وإشارات الفم والجهاز الهضمي.
- Zimmerman CA, Leib DE, Knight ZA. Neural circuits underlying thirst and fluid homeostasis. Nature Reviews Neuroscience. 2017. — مراجعة أساسية حول الدوائر العصبية التي تنظم العطش واتزان السوائل.
- Hiyama TY et al. The organum vasculosum of the lamina terminalis and subfornical organ: regulation of thirst. — مراجعة حديثة نسبيًا لآليات استشعار الصوديوم والأسمولالية ودور OVLT وSFO.
- McKinley MJ, Johnson AK. The physiological regulation of thirst and fluid intake. — مرجع في فسيولوجيا العطش وتنظيم السوائل، مع توضيح دور الأسمولالية والحجم والأنجيوتنسين والفازوبريسين.
- Knepper MA et al. Vasopressin and the Regulation of Aquaporin-2. — مراجعة حول الفازوبريسين وقناة AQP2 وتنظيم نفاذية الماء في القنوات الجامعة للكلية.
- Nielsen S et al. / مراجعات تنظيم AQP2. — مصادر متخصصة في آليات نقل الأكوابورين 2 وتنظيم توازن الماء على المستوى الخلوي والجزيئي.
- Stanhewicz AE, Kenney WL. Determinants of water and sodium intake and output. Nutrition Reviews. — مراجعة حول التفاعل بين آليات تنظيم الماء والصوديوم والسلوك والوظيفة الكلوية.
ملاحظة منهجية وحدود المقال
هذا المقال مادة تثقيفية عامة تهدف إلى شرح فسيولوجيا العطش وتنظيم الماء في جسم الإنسان، ولا تمثل تشخيصًا طبيًا أو علاجًا أو وصفة شخصية أو توصية بجرعات محددة من الماء أو الأملاح أو الأدوية.
كما ينبغي الانتباه إلى أن تبسيط العطش في صورة "مستشعر واحد" أو "مركز واحد في الدماغ" غير دقيق علميًا؛ فالأدلة الحالية تشير إلى شبكة عصبية وهرمونية وكلوية متعددة المستويات، تتفاعل فيها إشارات الأسمولالية وحجم الدم والصوديوم والهرمونات والإشارات الفموية والهضمية والسياق الفسيولوجي.
كذلك، فإن وجود العطش أو غيابه لا يكفي بمفرده للحكم على الحالة المائية أو تشخيص اضطراب طبي. بعض الأمراض والأدوية واضطرابات الكلى أو الهرمونات والجهاز العصبي قد تغير هذه العلاقة. لذلك فإن أي أعراض مستمرة أو غير معتادة، أو اشتباه في اضطراب توازن السوائل، تحتاج إلى تقييم طبي مناسب بدل الاعتماد على المعلومات العامة الواردة هنا.
وأخيرًا، فإن بعض التفاصيل الدقيقة في دوائر العطش العصبية، خصوصًا كيفية دمج الإشارات المختلفة وتحويلها إلى تجربة شعورية واعية، ما تزال مجالًا نشطًا للبحث العلمي؛ ولذلك يجب التمييز بين الآليات التي أصبحت راسخة نسبيًا وتلك التي لا تزال تُدرس على المستوى العصبي والجزيئي.




الرجاء تسجيل الدخول لتتمكن من التعليق